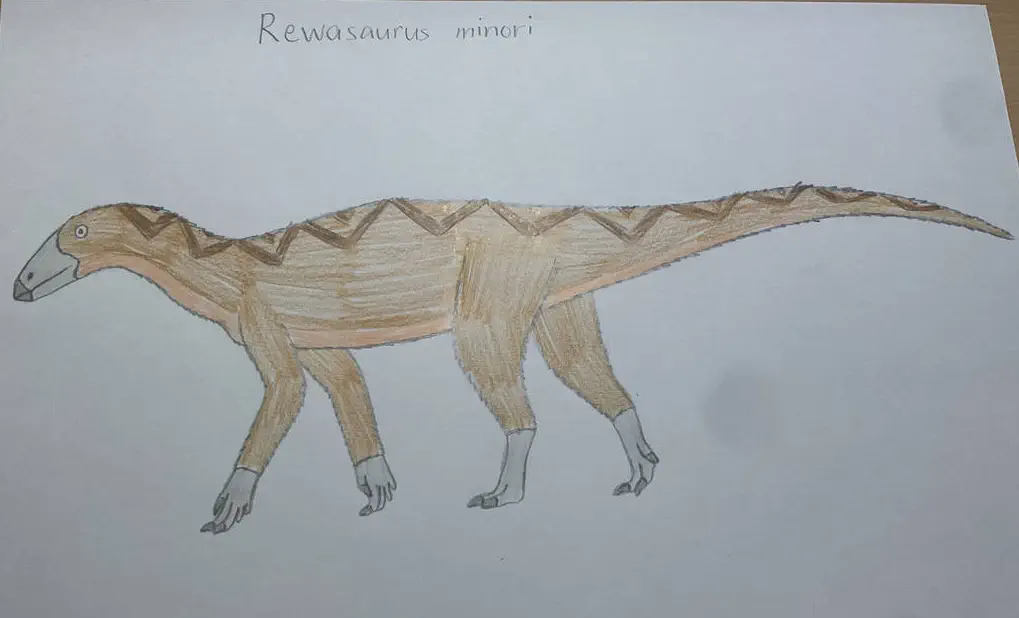
Rewasaurus — вимерлий рід динозавроморфів, споріднений з таксонами, які традиційно відносять до силезавридів (можливо, найдавніших птахотазових динозаврів). Він відомий із пізньотріасової (від карнійського до норійського віку) формації Тікі в Індії. Рід містить єдиний вид — Rewasaurus minori, відомий за фрагментом черепа.
Голотипний матеріал Rewasaurus minori складається з неповного черепа та з’єднаної нижньої щелепи. Він зареєстрований в Індійському технологічному інституті в Харагпурі (штат Західна Бенгалія, Індія) під номером IITKGPR1191. З тієї ж формації, але з іншої місцевості, було також зібрано дві ізольовані часткові стегнові кістки. Хоча вони зберігають ознаки силезавридів, їх не можна з упевненістю віднести до Rewasaurus через відсутність частин, що перекриваються.
У 2026 році Сулагна Сен (Sulagna Sen) з колегами описали Rewasaurus як новий рід і вид силезавридових динозавроподібних. Родова назва Rewasaurus походить від назви басейну Рева в штаті Мадх’я-Прадеш (Індія), де були знайдені скам’янілості. Видова назва minori походить від латинського слова minor, що означає «малий».
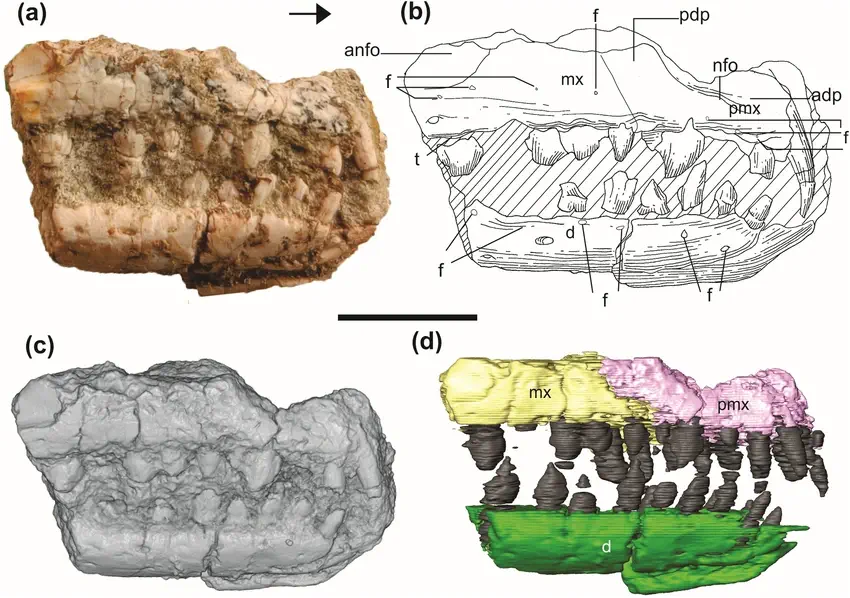
Rewasaurus — це невеликий силезаврид, довжина черепа якого, за реконструкцією, становить приблизно 7 см. Вчені вважають, що єдиний відомий екземпляр належить зрілій особині, виходячи зі зрощених черепних швів та добре розвиненого зубного ряду. Як і інші силезавриди, Rewasaurus має відносно струнку морду, гетеродонтний зубний ряд та беззубий загострений кінчик нижньої щелепи. Ревазавр відрізняється від інших силезавридів тим, що його верхній ряд зубів є відносно коротким порівняно з нижнім, кінчик зубної кістки лежить майже на одному рівні з рештою зубного краю, а передщелепна кістка має щонайменше п’ять зубів.
Верхня щелепа Rewasaurus відома лише за частковими рештками передщелепної та щелепної кісток, на яких зуби збереглися на своїх місцях. Поглиблення на верхньому краї премаксили, ймовірно, є носовою ямкою, яка зазнала пошкодження внаслідок тафономічних процесів. Щелепна кістка має прямий нижній край, що плавно переходить у нижній край премаксили. На зовнішній поверхні верхньої щелепи розташовані невеликі живильні отвори — по одному на кожен зуб, тоді як на кінці передщелепи зосереджено два або три отвори. Ці дві кістки з’єднуються кутовим, переплетеним швом. Беззубий кінець зубної кістки злегка вигинається вгору, звужуючись до гострого кінчика з кутом 13° між верхнім і нижнім краями. Кістка не має гребеня вздовж зовнішньої поверхні, на відміну від Diodorus, можливого близького родича. Невеликі отвори нерівномірно розташовані вздовж кістки нижче зубного ряду.
Щоб перевірити філогенетичні зв’язки Rewasaurus, вчені включили його до філогенетичних матриць Далле-Ласте (Dalle-Laste et al., 2025) та Мюллера (Müller, 2025). Матриця Далле-Ласте визначила всіх силезавридів як монофілетичну кладу, хоча їхні точні внутрішні взаємозв’язки встановити не вдалося, оскільки багато з них виявилися у невирішеній політомії. Матриця Мюллера визначила силезавридів як парафілетичну групу, що веде до традиційних птахотазових, причому Rewasaurus є членом групи Sulcimentisauria та сестринським таксоном до Diodorus.
Rewasaurus відомий із пізньотриасової формації Тікі, що входить до складу басейну Рева в центральній Індії. На основі палеоґрунтів припускається, що клімат, за умов якого відбувалося відкладення формації Тікі, був напівпосушливим із сезонними повенями та опадами. У цій формації також зафіксовано численні хребетні, такі як фітозаври (наприклад, Volcanosuchus, Parasuchus та Colossosuchus), динозаврів (таких як невизначені зауроподоморфи, тероподи та герреразаври), ринхозаврів, таких як Hyperodapedon, псевдозухій, таких як Tikisuchus, невизначені рештки, що належать до цих клад, а також різних інших рептилій, цинодонтів, темноспондилів, хрящових риб та променеперих риб.
Скам’янілості